Saltar al contenido principal
Universidad de Oriente
                   Núcleo Bolívar
Escuela de Ciencias de la Salud “Francisco Batisttini”
     Dpto. de Ciencias Fisiológicas: Bioquímica


    Profesora: Zulay Castillo Pérez
 Proteínas con actividad catalítica de los seres vivos.

 Unidades del Metabolismo

 Regulan la velocidad de las reacciones químicas espontáneas
  (ΔG-).

 No promueven reacciones no-espontáneas (Δ G +).

 Incrementan la velocidad de reacción 103 a 1012 veces sin afectar
  el sentido de la reacción.

 No forman parte del producto de la reacción.
Catalizador de origen biológico y naturaleza proteica, de alto peso
molecular y conformación tridimensional característica, acelera la
reacción al disminuir la energía de activación.


Contiene un centro activo, generalmente situado en un entorno
apolar. La actividad catalítica requiere que dicho centro adopte una
conformación determinada, mantenida por el resto de la molécula
proteica.
 No hacen factibles las reacciones imposibles

 Son sustancias que, sin consumirse en una reacción, aumentan
  notablemente su velocidad.

 Ello hace posible que en condiciones fisiológicas tengan lugar
  reacciones que sin catalizador requerirían condiciones extremas de
  presión, temperatura o pH.

 Prácticamente todas las reacciones químicas que tienen lugar en
  los seres vivos están catalizadas por enzimas.


 * En su mayoría son proteínas, hay ARN con capacidad catalítica (ribozimas)
Aumentan la velocidad de reacción
    De 106 a 1012 veces vs sin enzima.
    Aún más rápido que los catalizadores químicos.

Condiciones de reacción
    Temperatura 25-40 o C (algunas hasta 75 o C)
    pH neutro (5-9), la mayoría 6.5 – 7.5
    Presión atmosférica normal

Capacidad de regulación
    Por concentración de sustrato
    Por concentración de enzima
    Por inhibidores competitivos (semejantes al sustrato)
    Por inhibidores no competitivos (modificación covalente de la enzima)
    Por regulación alostérica

Alta especificidad de reacción
     Interacción estereoespecífica con el sustrato
     No hay productos colaterales.
Las enzimas simples están constituidas por proteína sin
requerir de la unión de otra molécula o grupo químico para
realizar su actividad catalítica.

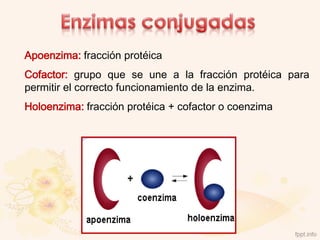
Las enzimas conjugadas poseen en su estructura una parte
no protéica esencial para su funcionamiento que según su
naturaleza puede llamarse cofactor o coenzima.
Apoenzima: fracción protéica
Cofactor: grupo que se une a la fracción protéica para
permitir el correcto funcionamiento de la enzima.
Holoenzima: fracción protéica + cofactor o coenzima
Átomo, ion o molécula que participa en el proceso catalítico
sin ser enzima ni sustrato.

Los cofactores participan de dos maneras distintas:


 A través de una fijación muy fuerte a la proteína y salen sin
ser modificados del sitio catalítico.


Como un segundo substrato; salen modificados del sitio
catalítico y por lo general requieren otra enzima para volver al
estado original.
En función de su naturaleza los cofactores se denominan:


Grupos prostéticos: se trata de iones o moléculas inorgánicas.


Coenzima: es una molécula orgánica. Aquí se puede señalar, que
muchas vitaminas funcionan como coenzimas; y realmente las
deficiencias producidas por la falta de vitaminas responde más bien
a que no se origina la coenzima, para una determinada enzima.
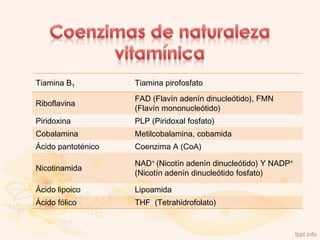
Tiamina B1          Tiamina pirofosfato
                    FAD (Flavín adenín dinucleótido), FMN
Riboflavina
                    (Flavín mononucleótido)
Piridoxina          PLP (Piridoxal fosfato)
Cobalamina          Metilcobalamina, cobamida
Ácido pantoténico   Coenzima A (CoA)

                    NAD+ (Nicotín adenín dinucleótido) Y NADP+
Nicotinamida
                    (Nicotín adenín dinucleótido fosfato)

Ácido lipoico       Lipoamida
Ácido fólico        THF (Tetrahidrofolato)
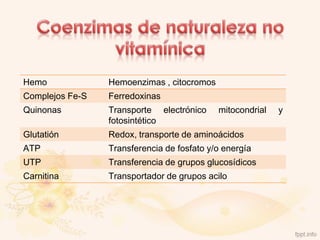
Hemo             Hemoenzimas , citocromos
Complejos Fe-S   Ferredoxinas
Quinonas         Transporte electrónico     mitocondrial   y
                 fotosintético
Glutatión        Redox, transporte de aminoácidos
ATP              Transferencia de fosfato y/o energía
UTP              Transferencia de grupos glucosídicos
Carnitina        Transportador de grupos acilo
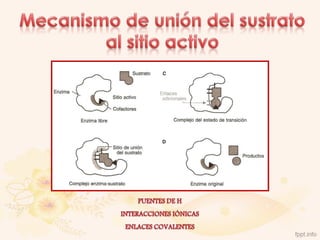
Región de la enzima donde se une la molécula de sustrato de
forma específica, suele ser un bolsillo o una hendidura que se
    forma entre las cadenas laterales de los aminoácidos.


Estas cadenas:
• Facilitan la unión del sustrato (especificidad de sustrato)
• Intervienen en la catálisis (centro catalítico)
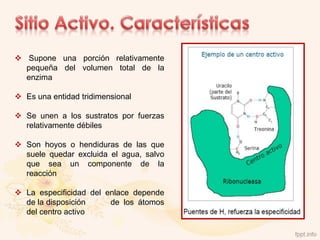
 Supone una porción relativamente
  pequeña del volumen total de la
  enzima

 Es una entidad tridimensional

 Se unen a los sustratos por fuerzas
  relativamente débiles

 Son hoyos o hendiduras de las que
  suele quedar excluida el agua, salvo
  que sea un componente de la
  reacción

 La especificidad del enlace depende
  de la disposición     de los átomos
  del centro activo
Lugar de la enzima en el que ocurre la catálisis y puede
incluir también:
• Coenzimas
• Cofactores
Puede coincidir o no con el centro activo
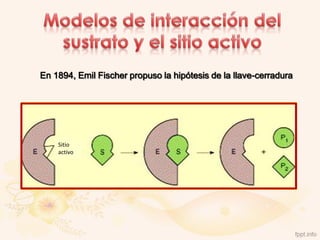
En 1894, Emil Fischer propuso la hipótesis de la llave-cerradura


    Sitio
    activo
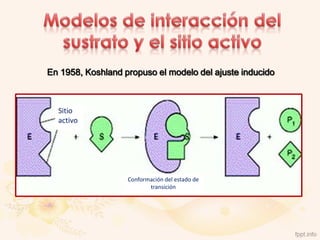
En 1958, Koshland propuso el modelo del ajuste inducido


  Sitio
  activo


                   Conformación del estado de
                          transición
Estereoespecificidad

 Centros activos asimétricos: sólo L-aminoácidos

 Capacidad de distinguir entre estereoisómeros


Especificidad geométrica

 Grupos químicos que interactúan con el sitio activo

 Más limitante que la estereoespecificidad

 Enzimás digestivas: más “preferencia” que “especificidad”
Antiguamente, las enzimas recibían nombres particulares, asignados
  por su descubridor.

Ejemplo:

amilasa (hidroliza el almidón)

            Glc + ATP  Glc-6P + ADP
  Al ir aumentando el número de enzimas conocidos, se hizo necesaria
  una nomenclatura sistemática que informara sobre la acción

  específica de cada enzima y los sustratos sobre los que actuaba.
Consta actualmente de 3 partes:

el sustrato preferente

el tipo de reacción realizado

terminación "asa"

Ejemplo: la glucoquinasa

            ATP-glucosa-fosfo-transferasa

              Glc + ATP  Glc-6P + ADP
El nombre es identificado por un código numérico:

Encabezado por las letras EC (enzyme commission), seguidas de
  cuatro números separados por puntos:

    el primer número indica a cual de las seis clases pertenece la
     enzima,

    el segundo se refiere a distintas subclases dentro de cada
     grupo,

    el tercero y el cuarto se refieren a los grupos químicos
     específicos que intervienen en la reacción.
Ej.: ATP:glucosa fosfotransferasa (glucoquinasa)


                 Glc + ATP  Glc-6P + ADP
EC 2.7.1.2.
2: transferasa
7: fosfotransferasa
1: el aceptor es un grupo OH
2: es un OH de la D-glucosa el que acepta el grupo
 fosfato.
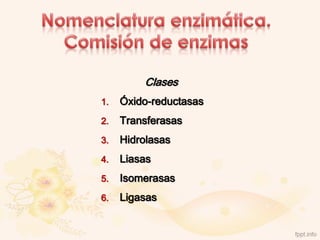
Clases
1.   Óxido-reductasas
2.   Transferasas
3.   Hidrolasas
4.   Liasas
5.   Isomerasas
6.   Ligasas
Catalizan reacciones de transferencia de hidrógeno (H) o
          electrones (e-) de un sustrato a otro


               AH2 + B      ⇄     A + BH2


          Ared + Box        ⇄        Aox + Bred
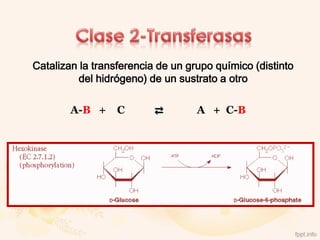
Catalizan la transferencia de un grupo químico (distinto
          del hidrógeno) de un sustrato a otro

        A-B +     C       ⇄        A + C-B
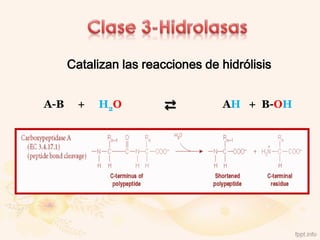
Catalizan las reacciones de hidrólisis


A-B    +   H2O          ⇄         AH + B-OH
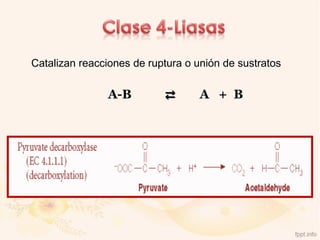
Catalizan reacciones de ruptura o unión de sustratos

               A-B         ⇄       A + B
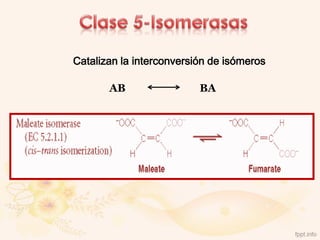
Catalizan la interconversión de isómeros

       AB                 BA
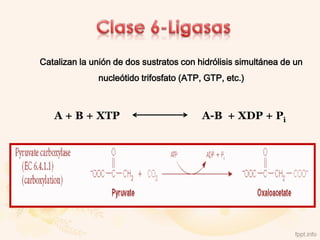
Catalizan la unión de dos sustratos con hidrólisis simultánea de un
              nucleótido trifosfato (ATP, GTP, etc.)


   A + B + XTP                           A-B + XDP + Pi
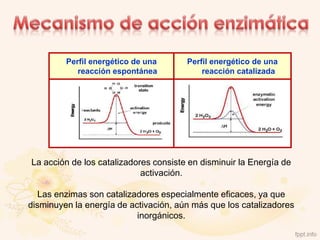
Perfil energético de una      Perfil energético de una
            reacción espontánea            reacción catalizada


La acción de los catalizadores consiste en disminuir la Energía de
                            activación.

   Las enzimas son catalizadores especialmente eficaces, ya que
disminuyen la energía de activación, aún más que los catalizadores
                           inorgánicos.
Por ejemplo, la descomposición del agua oxigenada (H2O2) puede ocurrir:


    sin catalizador                          Ea= 18 Kcal/mol
   con un catalizador inorgánico (platino)   Ea= 12 Kcal/mol
   con una enzima específico (catalasa)      Ea= 6 Kcal/mol


  Así, se puede calcular que el platino acelera la reacción 20.000
  veces, mientras que la catalasa la acelera 370.000 veces.
Para que una reacción química tenga lugar, las moléculas de los reactantes
  deben chocar con una energía y una orientación adecuadas.
La enzima :
    Aumenta la concentración efectiva de los sustratos (aumenta la
      probabilidad de choque)


    Permite que los reactantes (sustratos) se unan a su centro activo con

      una orientación óptima para que la reacción se produzca y


    Modifica las propiedades químicas del sustrato unido a su centro

      activo, debilitando los enlaces existentes y facilitando la formación de
      otros nuevos
Estudio cuantitativo de la catálisis enzimática que proporciona
información sobre las velocidades de reacción, afinidad de las
enzimas por su sustrato, mecanismos de reacción y los
inhibidores


Aplicación:
  - Mejor comprensión de las rutas metabólicas
  - Diseño de tratamientos más adecuados


Velocidad de una reacción bioquímica: Cambio de la
concentración de un reactante o un producto por unidad de
tiempo
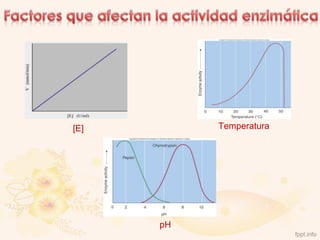
1. Concentración de sustrato

2. Concentración de enzima

3. pH

4. Temperatura

5. Efectores (Activadores e Inhibidores)
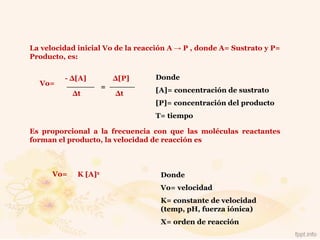
La velocidad inicial Vo de la reacción A → P , donde A= Sustrato y P=
Producto, es:


         - Δ[A]           Δ[P]    Donde
  Vo=                 =
            Δt            Δt      [A]= concentración de sustrato
                                  [P]= concentración del producto
                                  T= tiempo

Es proporcional a la frecuencia con que las moléculas reactantes
forman el producto, la velocidad de reacción es


      Vo=    K [A]x                 Donde
                                    Vo= velocidad
                                    K= constante de velocidad
                                    (temp, pH, fuerza iónica)
                                    X= orden de reacción
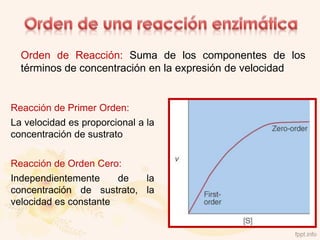
Orden de Reacción: Suma de los componentes de los
  términos de concentración en la expresión de velocidad


Reacción de Primer Orden:
La velocidad es proporcional a la
concentración de sustrato


Reacción de Orden Cero:
Independientemente     de  la
concentración de sustrato, la
velocidad es constante
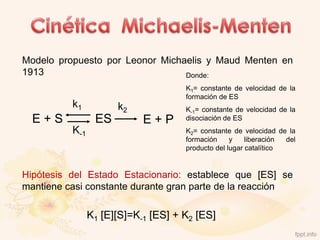
Modelo propuesto por Leonor Michaelis y Maud Menten en
1913                             Donde:
                                     K1= constante de velocidad de la
                                     formación de ES
          k1          k2             K-1= constante de velocidad de la
  E+S            ES         E+P      disociación de ES
          K-1                        K2= constante de velocidad de la
                                     formación     y    liberación del
                                     producto del lugar catalítico


Hipótesis del Estado Estacionario: establece que [ES] se
mantiene casi constante durante gran parte de la reacción

                K1 [E][S]=K-1 [ES] + K2 [ES]
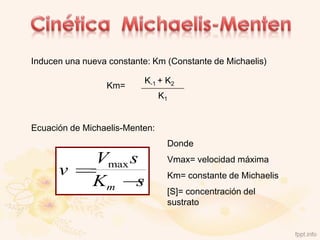
Inducen una nueva constante: Km (Constante de Michaelis)

                          K-1 + K2
                 Km=
                                K1


Ecuación de Michaelis-Menten:
                                 Donde
              Vmax s             Vmax= velocidad máxima
      v                          Km= constante de Michaelis
              Km s
                                 [S]= concentración del
                                 sustrato
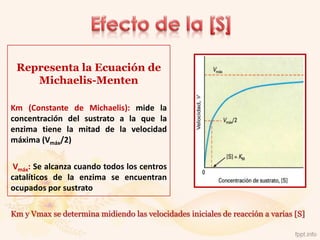
Representa la Ecuación de
    Michaelis-Menten

Km (Constante de Michaelis): mide la
concentración del sustrato a la que la
enzima tiene la mitad de la velocidad
máxima (Vmáx/2)

 Vmáx: Se alcanza cuando todos los centros
catalíticos de la enzima se encuentran
ocupados por sustrato

Km y Vmax se determina midiendo las velocidades iniciales de reacción a varias [S]
 No todas las enzimas cumplen las condiciones
(Enzimas alostéricas)


 Difícilmente aplicable a reacciones con dos
sustratos


 No se puede determinar con exactitud Vmax ni
Km (Hipérbola rectangular, nunca llega a Vmax)
 Unidades Internacionales (UI): Cantidad de enzima
necesaria para producir 1 μmol de producto/minuto


 Nueva Unidad: Katal
Cantidad de enzima que          transforma   1   mol   de
sustrato/segundo (6 x 10⁷ UI)

Grado de Pureza: Actividad Específica. Número de UI
en 1 mg de proteína
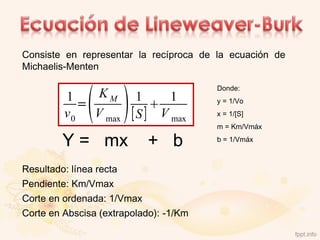
Consiste en representar la recíproca de la ecuación de
Michaelis-Menten

                                        Donde:
         1       KM      1      1       y = 1/Vo
         v0     V max    S    V max     x = 1/[S]
                                        m = Km/Vmáx

         Y = mx              + b        b = 1/Vmáx


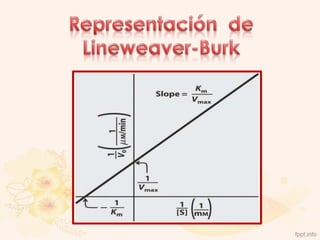
Resultado: línea recta
Pendiente: Km/Vmax
Corte en ordenada: 1/Vmax
Corte en Abscisa (extrapolado): -1/Km
Inhibidores: moléculas que reducen la actividad de una enzima
(fármacos, antibióticos, conservantes alimentarios, venenos)


  - Importante para regular las rutas metabólicas
  - Tratamiento clínico


Tipos de Inhibición Enzimatica:
 Isostérica: Reversible (competitiva,     acompetitiva   y   no
competitiva) e Irreversible


 Alostérica
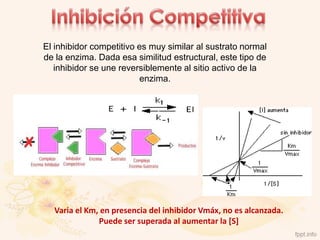
El inhibidor competitivo es muy similar al sustrato normal
de la enzima. Dada esa similitud estructural, este tipo de
   inhibidor se une reversiblemente al sitio activo de la
                         enzima.


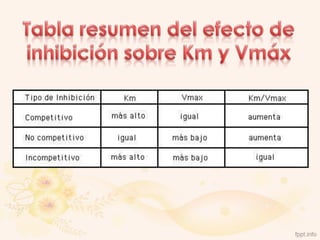
  Varia el Km, en presencia del inhibidor Vmáx, no es alcanzada.
              Puede ser superada al aumentar la [S]
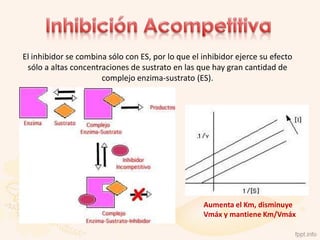
El inhibidor se combina sólo con ES, por lo que el inhibidor ejerce su efecto
 sólo a altas concentraciones de sustrato en las que hay gran cantidad de
                      complejo enzima-sustrato (ES).


                                                   Aumenta el Km, disminuye
                                                   Vmáx y mantiene Km/Vmáx
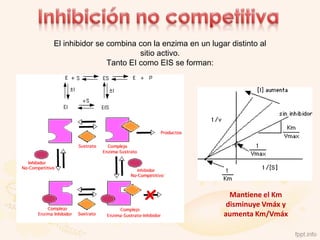
El inhibidor se combina con la enzima en un lugar distinto al
                         sitio activo.
                Tanto EI como EIS se forman:


                                                  Mantiene el Km
                                                 disminuye Vmáx y
                                                aumenta Km/Vmáx
Los inhibidores irreversibles reaccionan con un grupo químico de la enzima,
modificándola covalentemente, su acción no se describe por una constante
de equilibrio, sino por una constante de velocidad:


                  E+I                     E’
A diferencia de la inhibición reversible, el efecto de los inhibidores
irreversibles depende del tiempo de actuación del inhibidor.
Los inhibidores irreversibles son, por lo general, altamente tóxicos.


               Algunos tipos de inhibidores irreversibles

                      1. Reactivos de grupos -SH
                      2. Organofosfóricos
                      3. Ligandos de metales
                      4. Metales pesados
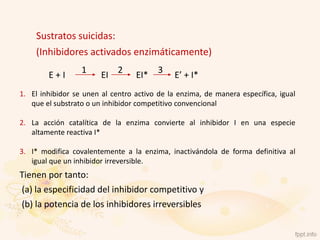
Sustratos suicidas:
    (Inhibidores activados enzimáticamente)
                  1          2           3
        E+I             EI        EI*         E’ + I*
1. El inhibidor se unen al centro activo de la enzima, de manera específica, igual
   que el substrato o un inhibidor competitivo convencional

2. La acción catalítica de la enzima convierte al inhibidor I en una especie
   altamente reactiva I*

3. I* modifica covalentemente a la enzima, inactivándola de forma definitiva al
   igual que un inhibidor irreversible.
Tienen por tanto:
(a) la especificidad del inhibidor competitivo y
(b) la potencia de los inhibidores irreversibles
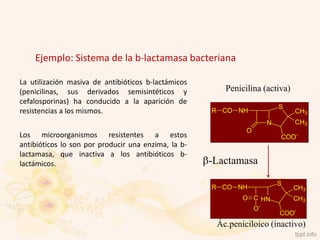
Ejemplo: Sistema de la b-lactamasa bacteriana

La utilización masiva de antibióticos b-lactámicos
(penicilinas, sus derivados semisintéticos y            Penicilina (activa)
cefalosporinas) ha conducido a la aparición de
                                                                        S
resistencias a los mismos.                           R CO NH                  CH3
                                                                    N         CH3
                                                              O
Los microorganismos resistentes a estos                                 COO-
antibióticos lo son por producir una enzima, la b-
lactamasa, que inactiva a los antibióticos b-
lactámicos.                                          -Lactamasa

                                                                        S
                                                     R CO NH                  CH3
                                                             O C HN           CH3
                                                               O-
                                                                        COO-
                                                      Ác.peniciloico (inactivo)
[E]        Temperatura


      pH
Características:
También llamadas regulables, la actividad de la enzima se
afecta por moléculas efectores que se unen en otros lugares;
sitios alostéricos o regulables


Catalizan pasos reguladores claves de las rutas bioquímicas


La regulación puede ser:
Activación alostérica: enzima aumenta afinidad por el
sustrato (disminuye su Km), así como su velocidad de catalisis
Inhibición alosterica: efectores negativos.
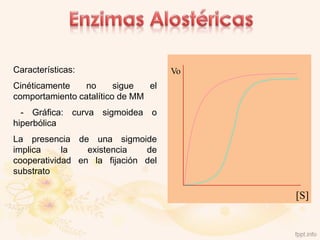
Características:                     Vo
Cinéticamente    no      sigue  el
comportamiento catalítico de MM
  - Gráfica: curva sigmoidea o
hiperbólica
La presencia de una sigmoide
implica     la   existencia   de
cooperatividad en la fijación del
substrato

                                          [S]
Enzimas Alostéricas
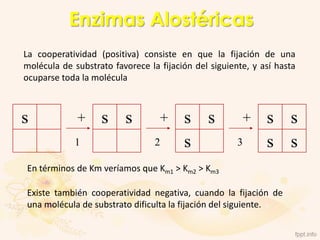
La cooperatividad (positiva) consiste en que la fijación de una
molécula de substrato favorece la fijación del siguiente, y así hasta
ocuparse toda la molécula


s            +     s s            +     s s               +   s s
             1                   2      s             3       s s
En términos de Km veríamos que Km1 > Km2 > Km3

Existe también cooperatividad negativa, cuando la fijación de
una molécula de substrato dificulta la fijación del siguiente.
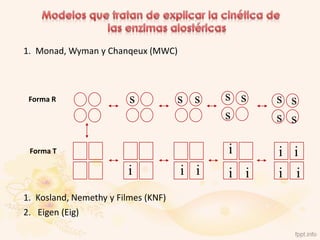
1. Monad, Wyman y Chanqeux (MWC)


 Forma R                 s           s s   s s   s s
                                           s     s s

 Forma T                                   i     i i
                         i           i i   i i   i i
1. Kosland, Nemethy y Filmes (KNF)
2. Eigen (Eig)
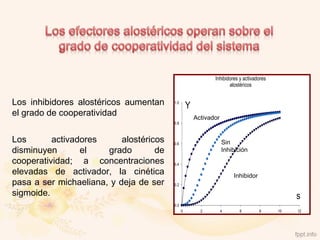
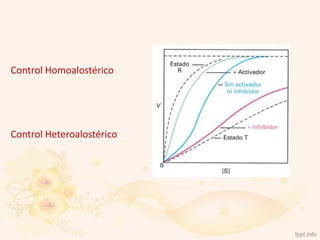
Inhibidores y activadores
                                                                     alostéricos


Los inhibidores alostéricos aumentan     1.0
                                                   Y
el grado de cooperatividad                             Activador
                                         0.8


Los       activadores      alostéricos   0.6                       Sin
disminuyen       el    grado        de                             Inhibición
cooperatividad; a concentraciones        0.4

elevadas de activador, la cinética                                     Inhibidor
pasa a ser michaeliana, y deja de ser    0.2

sigmoide.                                                                                      s
                                         0.0
                                               0         2         4      6        8      10   12
Control Homoalostérico


Control Heteroalostérico
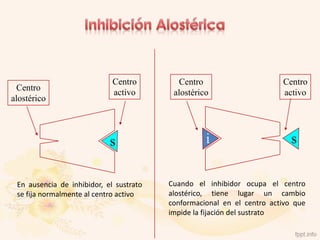
Centro        Centro                       Centro
 Centro
                             activo       alostérico                    activo
alostérico


                            s                      i                       s


 En ausencia de inhibidor, el sustrato   Cuando el inhibidor ocupa el centro
 se fija normalmente al centro activo    alostérico, tiene lugar un cambio
                                         conformacional en el centro activo que
                                         impide la fijación del sustrato
La mayoría de las enzimas catalizan reacciones con dos
o más sustratos


Varios mecanismos posibles
  - Orden de unión de los sustratos
  - Orden de liberación de los productos


Determinación más compleja que en las enzimas
monosustrato
  - Para cada sustrato hay Km, Kcat y Vmax
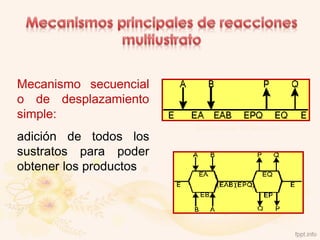
Mecanismo secuencial
o de desplazamiento
simple:
                        Secuencial Ordenado
adición de todos los
sustratos para poder
obtener los productos


                        Secuencial Aleatorio
Mecanismo de doble desplazamiento o ping pong:
No se han unidos todos los sustratos cuando ya hay
salida de productos
 Catálisis Covalente
  - Grupo reactivo que se une transitoriamente mediante enlace
covalente

 Catálisis Ácido-Base
  - Molécula diferente de H2O acepta o cede protón

 Catálisis por Iones Metálicos
  - Varias funciones, dependiendo de la reacción

 Catálisis por Aproximación

 Catálisis por unión del Estado de Transición
 Quimotripsina: proteasa que rompe enlaces
peptídicos adyacentes a los aminoácidos aromáticos


 Catálisis Covalente
  - Unión irreversible con el diisopropilfluorofosfato
(DFP)
  - Actividad de residuo clave, Ser 195


 Catálisis Ácido-Base
 - Otros dos elementos de “triada catalítica”
 - Asp 102 e His 57
Aprox. 30% de las enzimas usan iones metálicos:
  - Metaloenzimas unidas fuertemente a metales de
transición: Fe2+, Fe3+, Cu2+, Zn2+, Mn2+ o Co3+
  - Metaloenzimas unidad débilmente a metales en
solución: Na+, K+, Mg2+ o Ca2+


Mecanismos:
  - Enlace con el sustrato para permitir su adecuada
orientación
  - Participación   del   metal   en    mecanismos     de
oxidorreducción
 - Estabilizador de la reacción al atraer cargas negativas
del sustrato
Observada en reacciones con varios sustratos
 - Reactantes se encuentran en relación espacial
óptima

Proximidad: acercamiento simple de las moléculas
 - Aumentos de velocidad de hasta 5x

Orientación: acercamiento de los grupos
Uno de los mecanismos más importantes
  - Enzima tiene mayor afinidad por el estado
de transición    que por los sustratos o
productos


Conjuntamente    con  los  demás,   es
responsable de los grandes aumentos de
velocidad
Las rutas bioquímicas están organizadas en reacciones químicas
catalizadas por enzimas, donde la regulación se hace más compleja
Razones de la regulación:
 - Mantenimiento de un estado ordenado
 - Conservación de la energía
 - Respuestas a las variaciones ambientales
Se realiza:
 - Regulación de la concentración enzimática
 - Regulación de la actividad intrínseca de la enzima
        1. Regulación alostérica
        2. Regulación por modificación covalente
Regulación alostérica
Procesos a nivel celular; regulación de ajuste fino de la actividad
enzimática, a través de efectos de retroalimentación (negativa
o positiva)


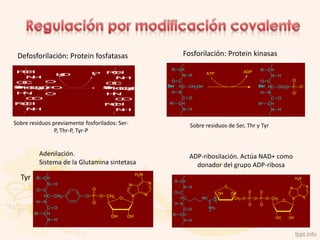
Regulación por modificación covalente
Procesos a nivel supracelular (orgánico); regulación a gran escala
de actividades enzimáticas, a través de modificación covalente
de enzimas, provocadas por señales (transducción de señales)
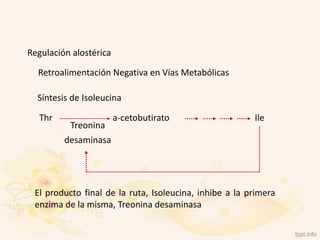
Regulación alostérica

  Retroalimentación Negativa en Vías Metabólicas

  Síntesis de Isoleucina

  Thr                   a-cetobutirato                  Ile
          Treonina
         desaminasa


 El producto final de la ruta, Isoleucina, inhibe a la primera
 enzima de la misma, Treonina desaminasa
Suele haber fenómenos de modificación covalente de
    enzimas en la respuesta celular a señales químicas:
1. Neurotransmisores

2. Hormonas

3. Factores de crecimiento

4. Estímulos morfogenéticos y de diferenciación

5. Muerte celular programada (apoptosis)

6. Estímulos antigénicos

7. Luz y otros agentes físico-químicos
Defosforilación: Protein fosfatasas                                    Fosforilación: Protein kinasas
                                                                     R CH                                      R CH
                                                                                 ATP                   ADP
                                                                         N H                                       N H
                                                                     O C                                       O C        O
                                                                   Ser H C CH2OH                              Ser HC CH2O P O-
                                                                     H N                                       H N        O-
                                                                         C O                                       C O
                                                                    R' CH                                     R' C H
                                                                         N H                                       N H


Sobre residuos previamente fosforilados: Ser-                              Sobre residuos de Ser, Thr y Tyr
                P, Thr-P, Tyr-P


          Adenilación.                                                    ADP-ribosilación. Actúa NAD+ como
          Sistema de la Glutamina sintetasa                                 donador del grupo ADP-ribosa
                                                    H 2N
  Tyr    R CH
                                                                     R CH
                                                                                                                                  H2N
             N   H                              N              N
                                                                         N H                   O                             N              N
         O C                  O
                                                                     O C                  OH       OH    O    O
           HC    CH2        O P    O CH2        N          N
                                           O                           HC      NH     N             CH2 O P O P O CH2         N         N
                                                                                    C H                                  O
         H N                  O-                                     H N                                 O-
                                                                                                              O-
             C   O                                                       C O        NH2
                                                                                    +
        R' C H                                                      R' CH
                                      OH       OH                                                                   OH       OH
             N   H                                                       N H
Son variantes de una misma enzima. Formas
físicamente distintas de una enzima pero que catalizan
una misma reacción

Enzimas multiméricas con varios tipos de subunidades
 - LDH: cuatro cadenas, tipos M y H
 - 5 isoenzimas diferentes
 - Preferencia por reacciones diferentes

Permite ajustes sutiles en función catalítica, una enzima
simple puede tener isoenzimas, ej: anhidrasa carbónica
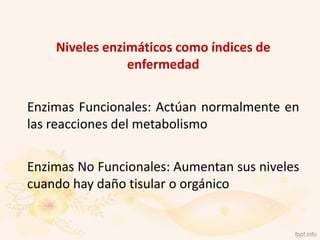
Niveles enzimáticos como índices de
                enfermedad

Enzimas Funcionales: Actúan normalmente en
las reacciones del metabolismo

Enzimas No Funcionales: Aumentan sus niveles
cuando hay daño tisular o orgánico
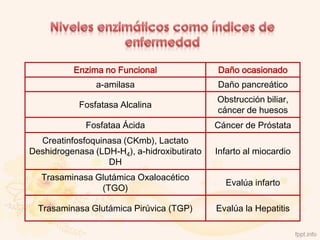
Enzima no Funcional                Daño ocasionado
                a-amilasa                    Daño pancreático
                                             Obstrucción biliar,
            Fosfatasa Alcalina
                                             cáncer de huesos
             Fosfataa Ácida                  Cáncer de Próstata
  Creatinfosfoquinasa (CKmb), Lactato
Deshidrogenasa (LDH-H4), a-hidroxibutirato   Infarto al miocardio
                  DH
   Trasaminasa Glutámica Oxaloacético
                                               Evalúa infarto
                (TGO)

  Trasaminasa Glutámica Pirúvica (TGP)       Evalúa la Hepatitis